REV GEOPHYS | 林地树干茎流动态及其与产流环境交互关系
第一/通讯作者:Delphis F. Levia 教授,美国科学促进会(AAAS)会士,就职于美国特拉华大学地理与空间科学系,主要从事生态水文学和森林生态学研究,研究方向包括树干茎流、树皮生态学、冠层水文过程等。
A review of stemflow generation dynamics and stemflow-environment interactions in forests and shrublands
林地树干茎流动态及其与产流环境交互关系
作者简介
第一/通讯作者:Delphis F. Levia 教授,美国科学促进会(AAAS)会士,就职于美国特拉华大学地理与空间科学系,主要从事生态水文学和森林生态学研究,研究方向包括树干茎流、树皮生态学、冠层水文过程等。
合作作者:Sonja Germer 博士,就职于德国莱布尼茨农业工程研究所。
发表时间
2015年
期刊简介
Reviews of Geophysics,美国地球物理联合会(AGU)旗下旗舰综述期刊,采用约稿制;2025 年影响因子 37.3,中科院地球科学大类 1 区 Top,地球化学与地球物理小类 1 区,地球科学领域最顶尖的综述平台之一。
壹
茎流研究的复兴
树干茎流(stemflow,以下简称“茎流”)指沿植物茎干表面流下、在树木基部以点源形式输入的水流,是冠层降水再分配(穿透雨、茎流、截留)的重要组成部分。自 Parker(1983)发表森林养分循环中穿透雨与茎流的综述、Levia & Frost(2003)发表茎流水文与生物地球化学循环综述以来,茎流研究呈爆发式增长。2003–2014 年间以 "stemflow" 为主题的论文达 460 篇,占同期 "forest hydrology" 主题论文(2168 篇)的 21.2%。茎流已被地学界广泛认可为能对森林生态系统的水文学、生物地球化学和生态学产生显著影响的重要现象。
图 1 森林生态系统的水文循环(树干茎流在降水再分配中的作用)
该研究定位于总结 2003 年以来茎流研究在五个领域取得的实质性新知,包括:
(1)茎流与气象条件的相互关系(尤其是单场降雨事件内部);
(2)茎流与冠层结构的动态互作;
(3)茎流与溶质循环及颗粒物输移;
(4)茎流与冠层真菌及树生地衣的相互作用;
(5)茎流—土壤相互作用。
此外,文章还系统评述了描述茎流的各种参数及其适用性,并呼吁学界使用统一指标以提升跨站点可比性。
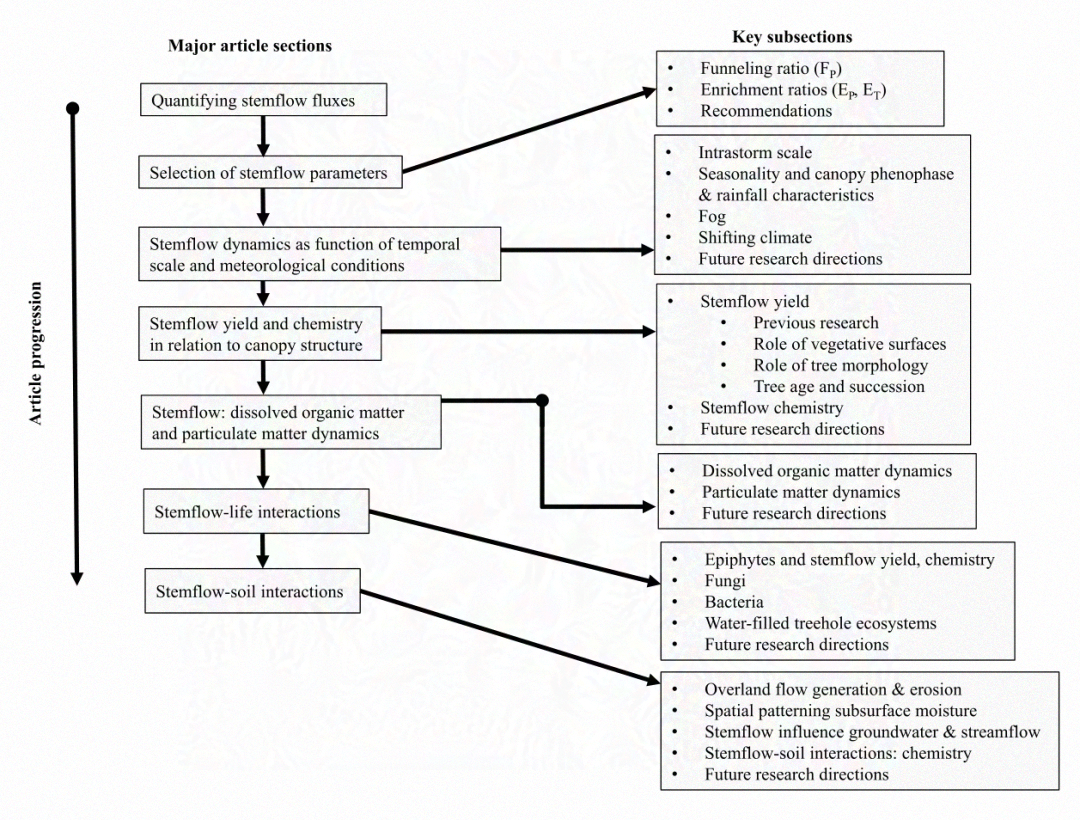
图 2 该研究主要章节与核心子章节的结构示意图
贰
茎流的量化方法
茎流测量通常在林分中选取少量代表性树木,用软管、聚氨酯垫、防水布或铝箔/塑料箔沿树干螺旋状或环状缠绕成收集环(collar),以硅胶密封防渗,接入收集桶(图 3)。规划阶段最常见的缺陷是低估了最大茎流速率,导致收集器容量不足。
样树应涵盖全部树种与径级。最简单的尺度扩展方法是用样树平均茎流量乘以单位面积株数。茎流占降水的百分比 S(%P) 为:
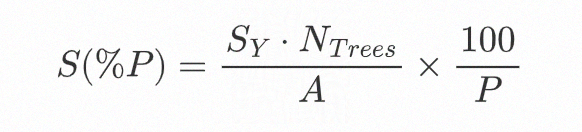
式中 SY 为样树平均(或中位)茎流量(L),N Trees为单位面积株数,A 为面积(m²),P 为降水量(mm)。
若按树种或径级分组加权则可表示为:
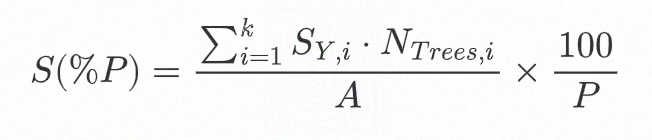
溶质通量 = 单株茎流量 × 浓度,再按组加权求和。
茎流可按事件、日、周、双周或月尺度用集总式收集器记录,也可用翻斗式收集器记录事件内过程。
文中特别强调:茎流输入的计量面积必须明确说明(森林通常按公顷,干旱区或散生树则按冠层投影面积),否则结果无法正确解读。
图 3. 不同研究使用的茎流收集装置示例:左上 Germer et al. (2010) 巴西朗多尼亚;左中 Levia et al. (2010) 美国东北部;左下 Levia et al. (2015) 德国图林根幼苗;右上与右下 Iida et al. (2012) 日本筑波实验林
叁
树皮的调节者和培养者角色
仅报告茎流量或浓度的原始数据会限制不同胸径树木间的可比性。表1系统评述了各种表达方式的优劣。其中无明显局限的两个参数是:(1)茎流占降水百分比 S(%P);(2)茎流对总通量(茎流+穿透雨)的贡献比例。S(%P) 是最常用的茎流指标,但低 S(%P) 并不必然意味着茎流在养分通量中可以忽略。
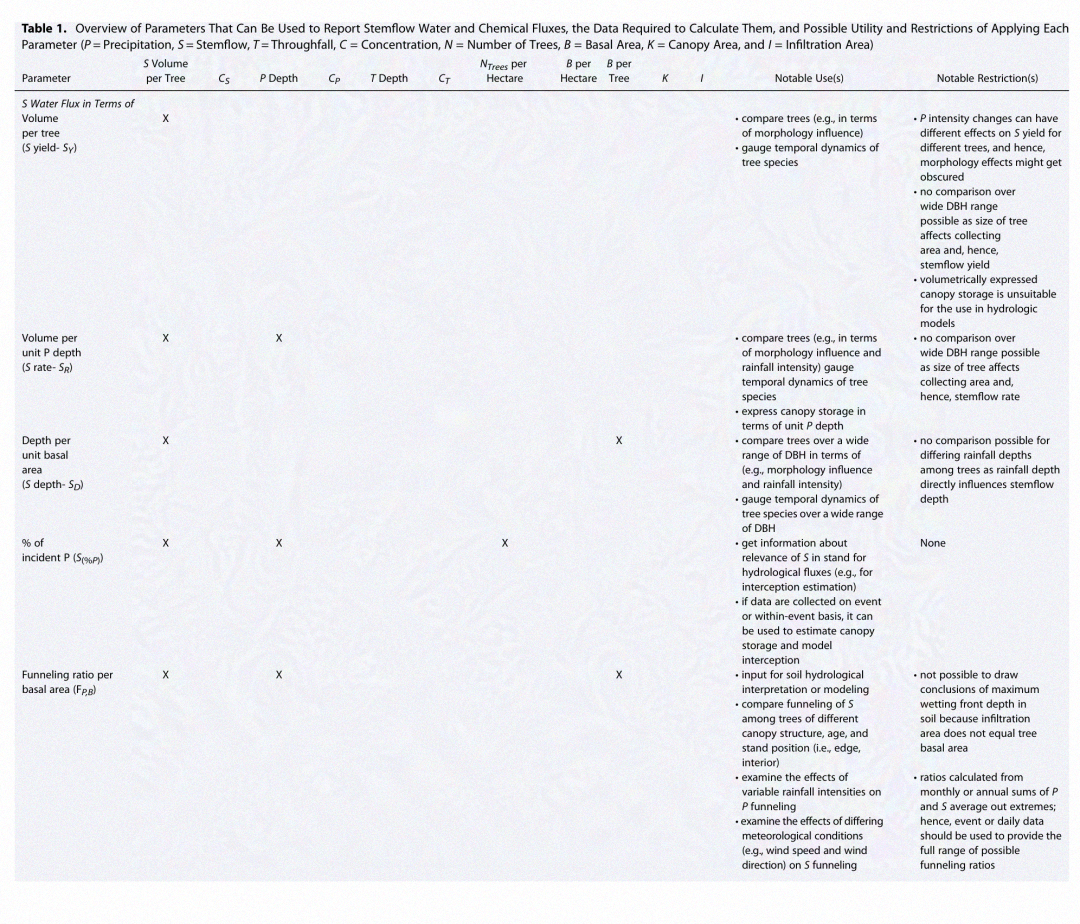
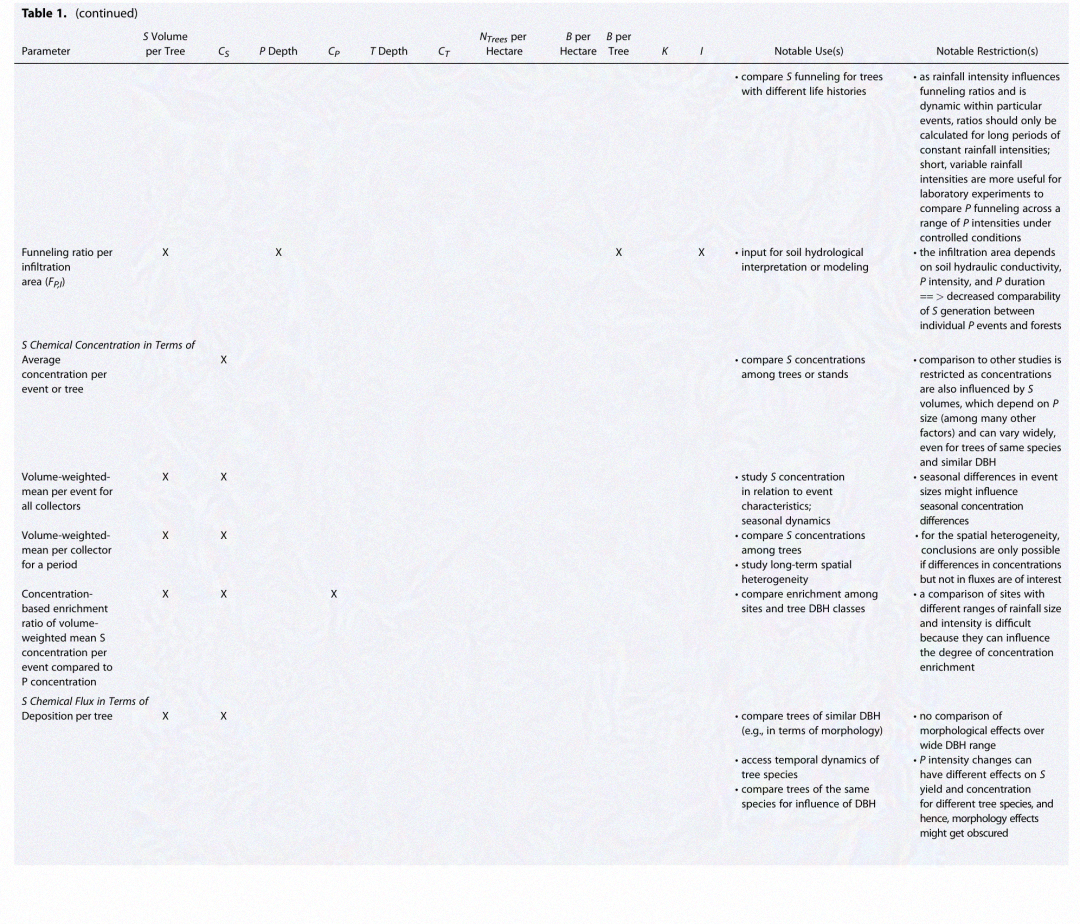
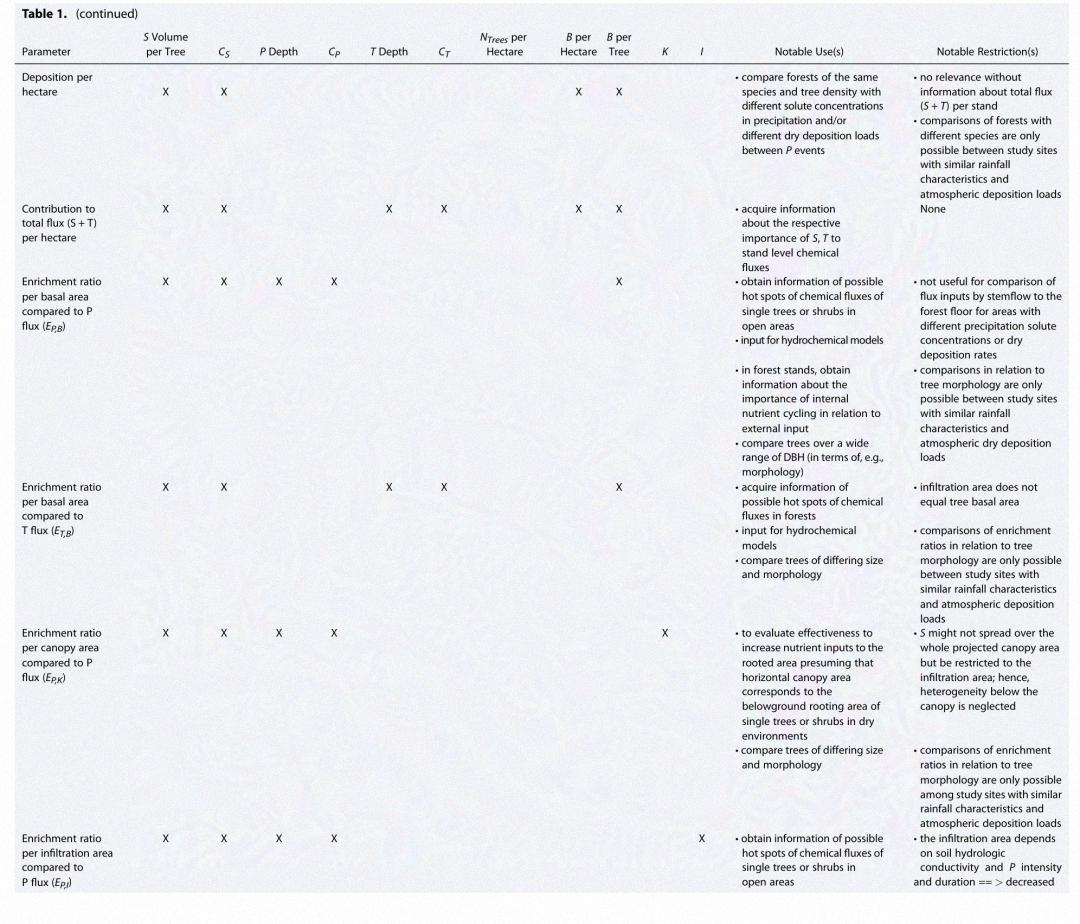
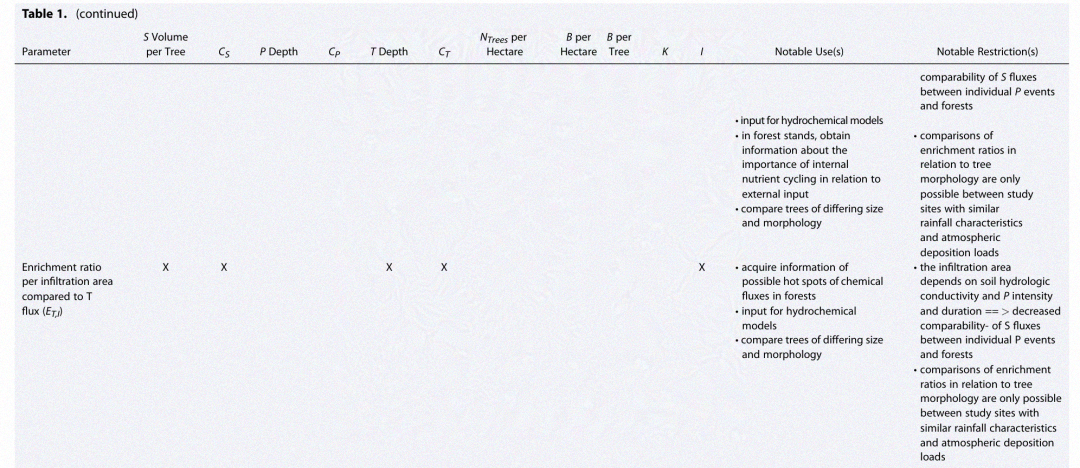
表 1. 茎流水文与化学通量报告参数总览:各参数所需数据、适用性与局限
茎流汇流率(Funneling Ratio, FP,B)
汇流率是跨林型、跨径级、跨地理区域比较茎流量与产流过程不可或缺的参数,也可作为水文模型的输入变量。FP,B > 1 表明树冠外围部分对茎流有贡献。不同时间尺度上的实测范围差异巨大:年尺度不同林型为 3–37;加拿大落叶树种季节尺度 7–26;中国半干旱灌木单场暴雨尺度平均 24–153(Li et al., 2008);单株可超过 100(Herwitz, 1986),大树也可能仅为 1 左右。随时间尺度从日到年积分,极端事件的高值被平均,FP,B 变异减小。作者建议未来研究同时报告事件、季节和年尺度的均值与范围。
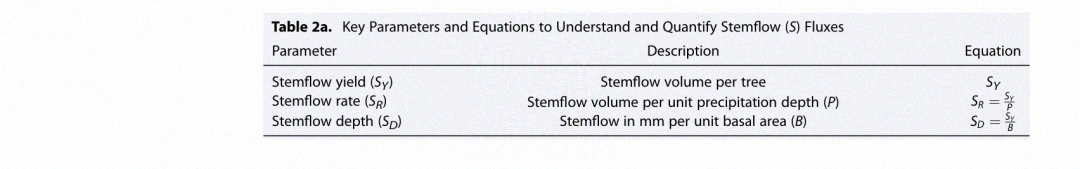
表 2a. 量化茎流(S)的关键参数与方程
茎流富集比(Enrichment Ratios, EP,B 与 ET,B)
富集比是基于通量的比值,量化树木在基部浓缩溶质(与颗粒物)的程度。EP,B 以降水为参照(Herwitz, 1986 定义),ET,B 为该研究**新提出**的以穿透雨为参照的变体,可反映林下养分输入的空间异质性。EP,B 值高度可变:美国山核桃(pignut hickory)冬季 K⁺ 的 EP,B 平均为 580,亚马逊雨林树种可达 1230。作者呼吁未来茎流化学研究同时报告 EP,B 与 ET,B,并保证足够的样树数量以克服株间变异。
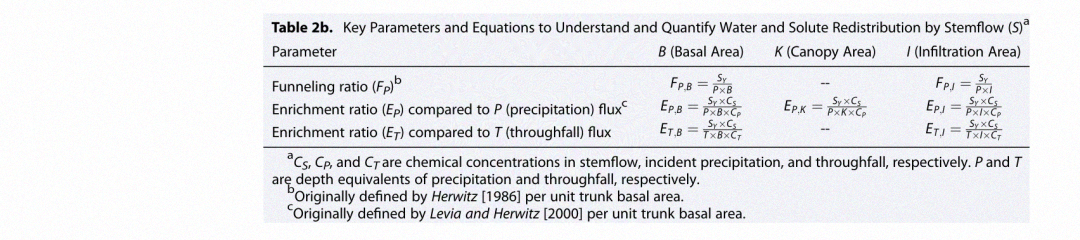
表 2b. 理解与量化茎流水分与溶质再分配的关键参数与方程
关于参数应用的建议
利用已发表的降水、穿透雨、茎流水量与养分通量数据重新计算的汇流率与富集比(表 3a、3b)给出了一个关键结论:低茎流百分比不等于低贡献。例如,山地常绿林与以外生菌根树种为主的雨林中,S(%P) 仅 2%,但以断面积计的茎流通量是同等面积降水的 8 倍;且如此低的茎流比例下,茎流仍贡献了约 10% 的矿质氮。S(%P) > 5% 的站点,茎流通常贡献总通量的 10–20%;热带疏林雨林中茎流对硝酸盐通量的贡献甚至超过 50%。作者由此强调:茎流即使占总通量比例不高,也可能形成通量热点(hot spots)。但热点在多大程度上影响生态系统整体收支,目前仍不清楚。
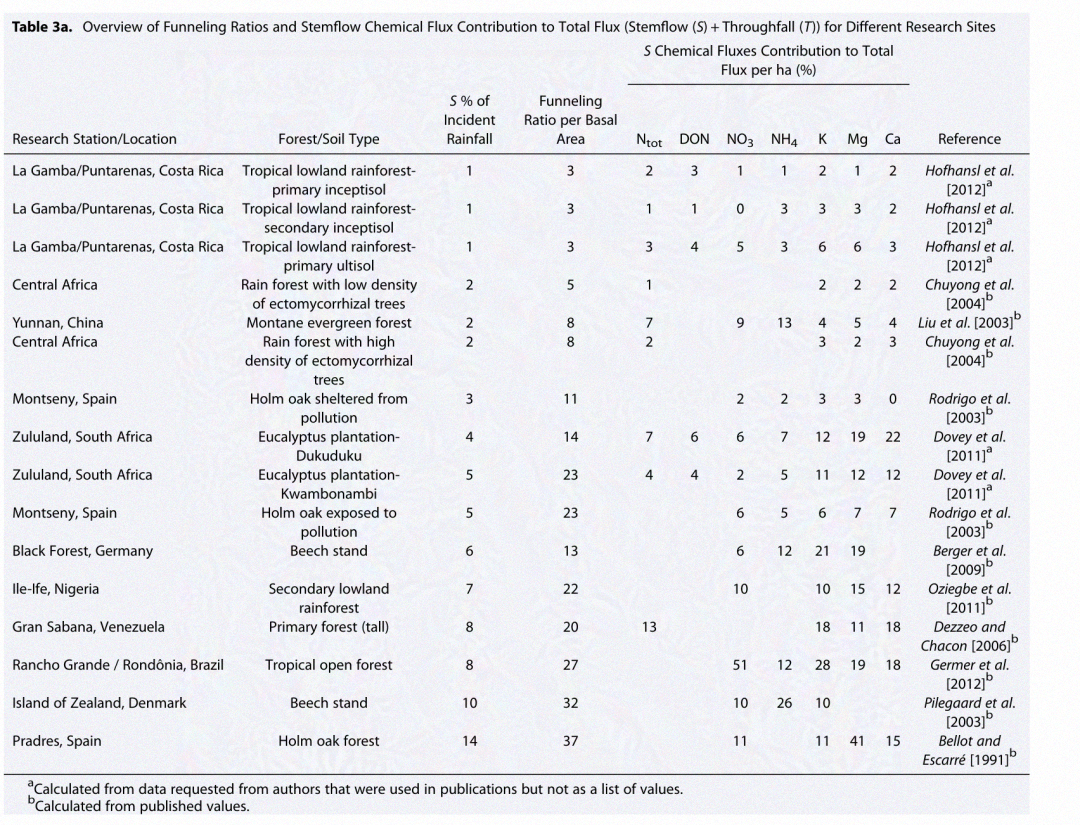
表 3a. 不同研究站点汇流率及茎流化学通量占总通量(茎流+穿透雨)比例总览
表3b 不同研究站点的胸高断面积与富集比(EP,B、ET,B)总览
肆
时间尺度与气象条件对茎流动态的调控
单场降雨事件内的茎流动态
水文方面:三项关键研究深化了对事件内茎流产流的认识。Reid & Lewis(2009)在美国西北加州红杉与花旗松老龄林以 5 min 分辨率记录 3 年,发现这两种针叶树的树皮储水容量高达 10–15 mm,茎流虽 < 5% 降水,但雨后可持续产流长达 48 h,提出了冠层动态储水(dynamic storage)概念。巴西巴巴苏棕榈雨后茎流可持续 11 h,归因于树冠"冠层土壤"(着生在树上的土壤)的储水与缓释。美国东部温带落叶树种中,当优先流通道的树皮储水容量饱和后,降雨输入与茎流产生呈显著同步性;美国山毛榉的 5 min 平均茎流产量约为鹅掌楸的 5 倍。风驱动降雨可在特定风下增强茎流产生,且冠层垂直深度更大的山毛榉在风力条件下产流效率更高。Dunkerley(2014b)的室内模拟实验发现:变强度降雨产生的茎流峰值通量大于恒定强度降雨,且峰值雨强出现在事件前段时茎流比例更大。事件内雨强的时间变化过程(而非平均雨强)是茎流比例的关键控制因子。
化学方面:事件内茎流溶质浓度与穿透雨一样呈指数衰减(干沉降淋洗主导),但初始淋洗达到的"稳态"输入并非恒定。风暴继续湿润新表面、开启新流道后,稳态输入量级会被再度抬高,说明茎流化学输入在事件内是动态的,对热点—热时刻(hot spots and hot moments)理论有直接意涵。同位素方面,事件内茎流 δ¹⁸O 变化显著(归因于 Rayleigh 蒸馏),约 70% 样品相对降水富集 δ¹⁸O;雨前树皮残留水分(因树种与树龄而异)也是茎流同位素信号的重要变异来源。
茎流的季节性:冠层物候与降雨特征的作用
多数树种在无叶期茎流量更大(如欧洲山毛榉产流阈值:无叶期 1.9 mm vs 展叶期 2.5 mm),但部分灌木的茎流量与叶的有无不相关。降水类型的影响惊人:在持续时间、雨量与雨强相似的情况下,降雨事件与雨转雪事件的茎流量可相差 4.2 倍;平均汇流率雪事件仅 0.3、降雨事件 13.9、雨转雪事件 22.5。降水事件类型的划分(低强度短时、低强度长时、高强度短时、高强度长时)也十分关键:无叶期长时事件茎流更大,而短时事件则相反。半干旱区灌木(如中国毛乌素沙地的沙柳 Salix psammophila 与沙蒿)茎流量随最大雨强增大,茎流可达冠层面积降水的约 8%(沙柳)与 3%(沙蒿)。此外,小时雨强过大反而降低山毛榉茎流量(优先流通道过载转为滴落),较大饱和水汽压差对应更低茎流输入,而风速在事件尺度上的作用因研究而异,婆罗洲热带低地林中 4/5 的茎流来自 > 20 mm 的风暴。
化学方面,比利时阿登地区山毛榉-栎混交林中,净茎流离子通量随雨量与前期干旱期长度增加而增大;无叶期干沉降速率、茎流离子浓度与通量普遍更高,茎流贡献了典型离子(Na⁺、K⁺、Ca²⁺、NH₄⁺)输入的 9–19%,H⁺ 更高达 38%。哥斯达黎加热带低地雨林中,茎流净通量主要源于冠层交换而非大气干沉降。
茎流与雾
雾是某些生态系统的关键水源。阿曼云雾林中茎流占净降水的均值高达 34%(归因于陡峭的分枝角度与雾滴小、雨强低的特征);澳大利亚热带雨林茎流比例随海拔从 2–3% 升至 11%(高茎密度 + 低叶面积指数促进云水截获);夏威夷热带山地云雾林中,入侵种番石榴的高茎密度林分茎流达 29%,远高于乡土树种林分。但加拉帕戈斯群岛迎风坡茎流不足 1%,丰富的附生植物覆盖与近水平分枝格局将水导离树干。可见雾输入与冠层结构共同决定茎产量。
茎流与气候变化
气候变化通过多条路径影响茎流:积雪时长与深度下降增加土壤冻结和硝酸盐、磷酸盐淋失;降水类型转变(雪事件减少、雨转雪事件增多)会增加茎流淋洗量(雨转雪事件对 K⁺、Ca²⁺、Mg²⁺、NO₃⁻ 的淋洗高于纯降雨事件)。间接效应同样重要:山松甲虫暴发导致的森林大面积衰退改变蒸腾与截留;枯立木的茎流动态刚开始被认识——活立木与受胁迫树木的单场降水茎流量约为枯立木的 60 倍,产流阈值也更低(Frost & Levia, 2014)。
小结
雾滴粒径及其分布对茎流启动的影响亟待研究(可用相位多普勒颗粒分析仪);
气候变化对茎流的直接效应(雪事件减少、展叶期延长)与间接效应(虫害、火灾、冰暴及协同作用)需分别量化,同位素手段被寄予厚望。
伍
冠层结构与茎流产流及化学特征
茎流产流量
枝条倾角与树皮特征:热带树种枝倾角与枝流量关系在高强度降雨下由线性转为对数(Herwitz, 1987);干旱区灌木枝倾角 > 45° 者产流最大。粗糙树皮减少茎流是长期共识,但**树皮沟壑的走向**同样关键:粗糙但具线性沟壑的树皮可有效导流(如北部红栎),而脊状交叠或剥离的粗糙树皮反而抑制茎流(如山核桃)。单株树皮储水容量可达数百升,且种间差异显著(北部红栎 ~0.67 mL cm⁻³ vs 甜桦 ~0.44 mL cm⁻³)。
树体形态与冠层上部主导性:茎流不成比例地产自冠层上部(树皮更薄、储水容量更低、枝倾角更大、暴露更充分)。日本短柱紫茎(Stewartia monadelpha)的上冲分枝与光滑树皮使其茎流高达降水的 12%;树干下坡倾斜导致不对称排水,下坡侧输入更多。冲绳亚热带森林因斜伸枝条与凹陷叶形,茎流平均达降水的 30.9%。
基于控制实验的分析:Levia et al.(2015)以 10 株孤立欧洲山毛榉幼苗开展的田间实验(控制树体大小后)发现,控制茎流量的首要因素是木质生物量与叶生物量之比、单位冠层投影面积枝条数及平均枝倾角——高产出组(平均枝倾角 39.3° vs 30.2°)茎流量几乎是低产出组的 2 倍。
树龄、演替与土地利用:日本扁柏 9至12 年生汇流率从 81.3 骤降至 30.0(冠层郁闭变化所致);17 年演替实验中红松纯林向常绿栎类混交林的转化(红松减少 75%)反而显著增加茎流;间伐使穿透雨增加、茎流减少(密度促进茎流);婆罗洲低地林中 1–5 cm DBH 的林下幼树贡献了 57.5% 的总茎流量。作者建议按固定径级分别报告茎流结果并计算小径级汇流率。土地利用变化的效应同样显著:亚马逊流域大豆田茎流占降水 9%,而原生林不足 1%;农林复合系统中的咖啡(10.6%)高于单一种植(7.2%)。
茎流化学
冠层结构对茎流化学影响的研究明显偏少。枝倾角对淋洗化学有可检出效应:与水平呈 20° 的枝条其盐基阳离子枝流量显著高于 5° 或 38°,其中20° 达到了雨滴截获、枝流量与滞留时间之间的最优平衡。树种迁移同样改变生物地球化学循环:入侵的毛竹显著改变了阳离子、N、S、Cl⁻ 与 SiO₂ 循环;美国肯塔基东部火抑制导致的栎类向红花槭的树种转变,使茎流量增加 2–3 倍、其下土壤冬季净硝化速率提高 5–13 倍。
未来方向
冠层结构—茎流化学关系存在三大急需突破的方向:
(1)溶解有机质(DOM)特征与 PAI、枝倾角、树干倾斜、冠层不对称及木质表面积的关系;
(2)茎流颗粒物化学特征与冠层结构参数的关系;
(3)植物表面特性(叶面与皮面)对茎流化学的影响。激光雷达精细冠层结构模型与茎流化学测量的耦合、显微技术将微/纳米尺度表面特征与产流过程联接、以及树皮表面污染物运移的色谱效应与数学模型,都是富有前景的路径。
陆
茎流中的溶解有机质与颗粒物动态
溶解有机质(DOM)动态
茎流浓度并非总高于穿透雨,取决于报告均值还是最大值(表 4)。英国 Plynlimon 流域的系列研究显示茎流中碘与 DOC 浓度呈线性正相关。**污染物循环**方面:茎流可携带三氯乙酸、重金属(暴露站点显著高于遮蔽站点)、除草剂(茎流中检出时长比雨水中至少长 14 天)乃至放射性核素(日本扁柏下方 ¹³⁷Cs 通量 120 Bq m⁻²,柳杉下方仅 30 Bq m⁻²)。微量元素方面,日本冷杉茎流硼均值浓度是穿透雨的 2 倍多;中性糖总浓度茎流(24.4 μM)远超穿透雨(5.10 μM)与降水(1.50 μM)。
表 4. 英国威尔士 Plynlimon 实验流域降水、穿透雨与茎流中碘、可溶态活性溴、铍与溶解有机碳浓度
DOC 浓度与通量因树种与林型差异巨大:北方森林 36.6–64.2 mg L⁻¹;台湾杉木人工林(30.8 mg L⁻¹、132.4 kg ha⁻¹ yr⁻¹)远高于次生林与天然阔叶林;亚马逊成熟林变幅 775–1317 μmol L⁻¹,茎流/降水 DOC 浓度比 2.5–4.7,证实冠层是 DOC 的源。季节维度上,旱季末树干淋洗与疏水性化合物(木质素降解产物)主导的茎流 DOC 构成,使雨季初期以亲水组分为主、后期转为疏水组分。Levia et al.(2012)对美国山毛榉与鹅掌楸的多尺度研究显示:山毛榉事件内 DOC 呈指数衰减而鹅掌楸保持相对恒定;两树种 SUVA₂₅₄ 随事件进程上升、E2:E3 比值下降。不同化合物在不同时间被茎流输送到林下。
颗粒物(PM)动态
直接采集并定量茎流颗粒物的研究极少。已有证据表明:茎流将大气污染物颗粒浓缩于树干基部形成热点(斯洛伐克钢厂附近);茎流能有效传输葡萄花粉。Levia et al.(2013)基于 10,035 颗颗粒物的定量分析给出首个茎流颗粒物粒径分布:展叶期与无叶期平均粒径分别为 4.4 ± 5.4 μm 与 3.5 ± 3.5 μm,分布均显著右偏(偏度 18.1 vs 10.7),凸显冠层物候对颗粒物循环的重要性。
未来方向
荧光光谱(EEM 激发—发射矩阵)有望揭示茎流 DOM 化学特征;林缘 vs 林内树木的对比(林缘鹅掌楸酸中和容量显著更高)值得拓展至茎流 DOM;中性糖与硼的循环、虫害爆发对茎流化学的影响、事件内颗粒物运移、树皮表面化学与颗粒物运动的相互作用(表面张力差异是否导致有机分子分馏?树皮沟壑毛细作用是否差异化输移污染物?)等问题均有待回答;核磁共振(NMR)可用于解析茎流颗粒物化学特征。
柒
茎流与生命体的相互作用
附生植物与茎流
产量方面:附生植物普遍降低茎流量。太平洋西北部老龄花旗松枝条上的地衣苔藓通过增加表面粗糙度抬高冠层储水容量、阻碍枝流;厄瓜多尔与墨西哥山地云雾林的维管附生植物覆盖度越高、茎流比例越低;哥斯达黎加非维管附生植物亦然。
化学方面:Hauck 等提出的"茎流化学假说"认为衰退树木因针叶损失降低了对 S、H、K 等元素的截获,茎流富集度下降,从而有利于地衣着生。锰(Mn)是关键元素:欧洲与北美站点均显示地衣丰度随树皮/茎流 Mn 暴露增加而下降,蓝藻地衣(如肺衣 *Lobaria pulmonaria*)对间歇性 Mn 输入高度敏感。树皮 pH 与茎流 pH 是地衣苔藓多样性的最强关联因子。光滑薄皮树种(如欧洲山毛榉)茎流 pH 低。氮方面,附生苔藓直接利用茎流氮且优先截获铵态氮。
真菌:茎流是真菌孢子传播的重要载体——单个样本每毫升茎流水中可含数百至上千个分生孢子,支持"水膜理论"(真菌孢子沿湿润植物表面的水膜传播)。匈牙利 13 株不同树种的几乎所有茎流样本都含真菌分生孢子;德匈罗瑞四国 25 株树木的茎流与穿透雨中检出 62 种丝孢菌,夏季山毛榉属茎流真菌多样性最高,支持"树栖水生丝孢菌"具有广泛生物地理分布的观点。针叶树小枝表面真菌多样性高于阔叶树,可能与其更粗糙的树皮结构(或更低的茎流量/更少的机械扰动与毒害溶质暴露)有关。
细菌:意大利中部 60 年生南欧黑松树皮上的氨氧化细菌与树干基部近端土壤相似、而与 150 cm 外土壤不同——可能因茎流将细菌输送到皮下,或两类生境的高酸度共同选择了相同菌群。但总体上茎流—细菌相互作用的证据仍然匮乏。
树洞生态系统
茎流向树洞生态系统输入养分:降雨后 1 天树洞细菌产量即上升("连通阶段"效应)。控制实验表明茎流对东部树洞蚊子幼虫的主要作用是养分添加而非对有毒化合物的稀释。
未来方向
四大优先领域值得深入研究:
(1)跨生态区茎流微生物(真菌+细菌)物种组成普查;
(2)微生物对茎流化学的单独、联合、叠加与协同效应;
(3)微生物组成随物候期的变化;
(4)树皮微地形与微生物群落组成的联系(尤其是元素循环方面)。皮层圈(cortisphere),即树皮表面及其上生活的生物群落,是水文、生物地球化学与微生物生态学的交汇领域,亟待开展跨学科合作。
捌
茎流—土壤相互作用
地表径流产生与侵蚀
茎流速率超过土壤入渗能力时可引发超渗地表径流(热带雨林,Herwitz, 1986);香蕉园模拟研究显示茎流与起垄措施结合可使地表径流增至裸土的 3 倍,且将茎流纳入水文模型显著改善低流量模拟。
茎流诱导的土壤侵蚀在多个生物群系被推断或证实:澳大利亚昆士兰澳洲坚果果园因茎流(约占冠层面积降水 7%)导致严重侵蚀(6.5 mm m⁻² yr⁻¹),以致新南威尔士州政府专门发布视频建议改种冠层结构差异大、茎流量少的品种;但玉米与高粱的茎流侵蚀可忽略。
土壤水分空间格局、优先流与壤中流
茎流入渗后,小流量以基质流为主、大流量则以沿大孔隙的优先流为主。茎流与根系优先流的组合被 Johnson & Lehmann(2006)称为树木的"双漏斗效应"。
染色示踪实验证实沙漠灌木(沙柳等)、日本短柱紫茎与温带山毛榉均存在沿根优先流;幼龄巴巴苏棕榈的降水经叶片直接汇集到 25–50 cm 深的地下茎。
双染料示踪技术可区分穿透雨与茎流各自的优先流路径。对油棕的 HYDRUS-2D/3D 反演表明:茎流区表层 10 cm 土壤入渗率、孔隙度与有机质含量更高、容重更低,近树干饱和导水率与饱和含水量更高。地形亦有影响,比如树干下坡侧土壤水分增幅更大。
植被清除会降低土壤水分空间异质性:德克萨斯石灰岩地区清除桧柏后,>50 cm 深壤中流显著减少,从茎流局地输入转为均匀降雨输入的直接后果。
茎流对地下水与河川径流的影响
日本赤松林的氯离子质量平衡与模拟研究证实茎流影响地下水补给;香蕉园行下排水量是行间的 6 倍(茎流所致)。但茎流空间异质性输入是否影响河川径流化学的证据仍然缺乏:有研究发现河川化学主要受基岩控制、茎流无影响;端元混合分析虽证明河水中存在茎流端元,却无法证明其对径流化学的显著影响。
茎流—土壤化学相互作用
树干近旁土壤 pH 更高、盐基饱和度与 NO₃-N 含量更高;中亚沙漠灌木主根 20 cm 范围内养分浓度尤其高。污染背景下,茎流诱导的土壤化学异质性更加突出:钢厂附近重金属仅在树干近旁检出超标;波兰山毛榉林树干基部土壤重金属含量更高、pH 更低;城市区表层土 Al、Fe、Mg、Cu、Pb、Cd 浓度因茎流而升高(郊区对照点无此现象)。
未来方向
作者提出三个核心科学问题:
(1)何种条件下茎流集中的水养分输入 (a) 被植物自身利用、(b) 形成土壤微生物活动的热点与热时刻?
(2)何种土壤—植被—气候组合下茎流可驱动局地深渗透与地下水补给(乃至影响地下水化学)?
(3)沿根优先流是否真的比基质流更快地将水分输送到根系层之外?
此外,污染物沿"树皮—茎流—土壤"链条的运移与归宿、以及雷暴(短时高强度)与飓风/台风(长时变强度)两类极端事件对茎流—土壤相互作用的差异化影响,都是急需研究的前沿。
玖
总结
近年来关于茎流及其对林地生态系统重要性的认识大幅增长。随着更多科学家认识到茎流在林地生态系统水文与生物地球化学循环中的地位,相关研究数量还将继续增加。
未来的 exciting opportunities 包括:利用现有与新兴技术建立皮层圈微生物生态学与茎流的确定性联系、追踪大气气溶胶经冠层与包气带的运移归宿、揭示茎流沿枝干流动的化学物理机制及其与真菌、细菌、树皮附着生物和截获气溶胶的动态互作。
这些努力将使茎流被更好地置于流域水文学与生物地球化学的大框架之中,进而更准确地刻画流域的热点与热时刻。
Levia, D. F., & Germer, S. (2015). A review of stemflow generation dynamics and stemflow‐environment interactions in forests and shrublands. Reviews of Geophysics, 53(3), 673-714. doi:10.1002/2015RG000479